小服AI
鲍曼不动杆菌是全球医院获得性感染的主要病原体,多重耐药菌株尤其是碳青霉烯耐药株的广泛流行,导致感染死亡率高达 30%-91.7%,严重威胁公共卫生安全。AmpC β- 内酰胺酶过表达是其重要耐药机制,但其活性调控机制长期未明,且蛋白质磷酸化在细菌耐药中的作用缺乏功能验证。本研究采用来自同一患者的同源亚胺培南敏感株 SK17-S 与耐药株 SK17-R,通过比较磷酸化蛋白质组学结合定点突变技术,首次鉴定到 AmpC 催化基序 S⁸⁸VS⁹⁰K 中的 Ser-90 磷酸化位点。研究证实,Ser-90 磷酸化负调控 AmpC 酶活性及细菌对亚胺培南的耐药性:非磷酸化突变体 S90A 酶活性显著升高,耐药性增强;磷酸化模拟突变体 S90D 酶活性几乎丧失,细菌恢复敏感性。该发现挑战了 AmpC 仅通过表达量上调介导耐药的传统观点,揭示了翻译后修饰调控耐药的新机制,为靶向细菌激酶 / 磷酸酶的新型抗菌药物研发提供了关键靶点,也为多重耐药菌感染的治疗开辟了新方向。
本文使用达索系统 公司的 Discovery Studio 4.0软件作为核心的计算结构生物学工具,完成了 AmpC β- 内酰胺酶的同源建模、分子对接及活性位点结构分析,为实验结果提供了关键的分子机制解释,是连接磷酸化蛋白质组学发现与功能验证的重要桥梁。
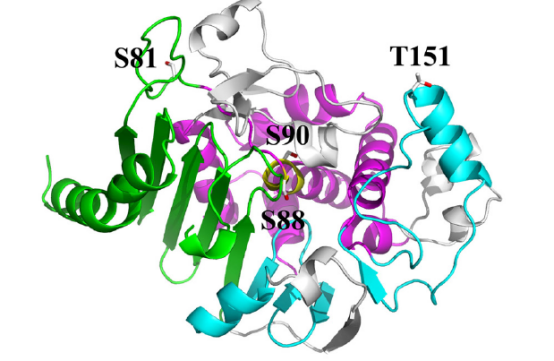
为了从结构上解释AmpC 三个丝氨酸磷酸化位点(Ser-81、Ser-88、Ser-90)的功能重要性,特别是位于催化基序内的 Ser-88 和 Ser-90,需要构建高精度的 AmpC 三维结构模型。选用分辨率为 1.2 Å 的鲍曼不动杆菌 ADC-1 型头孢菌素酶晶体结构(PDB ID: 4net)作为模板,该酶与 SK17 菌株的 AmpC 具有99% 的序列同一性,保证了建模结果的极高可靠性。使用 Discovery Studio 4.0 的默认同源建模协议(Homology Modeling protocol)完成模型构建。明确了三个磷酸化位点的空间位置:Ser-88 和 Ser-90 共同位于结构域 2(催化结构域)的核心催化基序S⁸⁸VS⁹⁰K⁹¹中Ser-81 位于结构域 1的表面Thr-151 位于P2 环结构域,这一结构定位直接提示了 Ser-88 和 Ser-90 可能直接参与酶的催化过程,为后续的定点突变实验提供了明确的靶点选择依据。
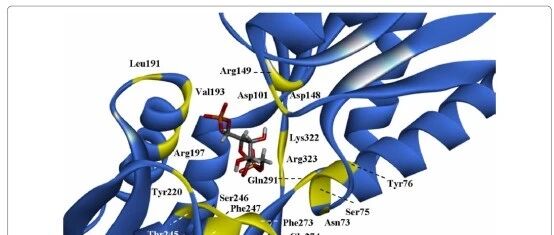
为了阐明 Ser-90 磷酸化调控 AmpC 酶活性和亚胺培南耐药性的分子机制,需要比较野生型 AmpC、Ser-90 磷酸化 AmpC、S90A 突变体和 S90D 突变体与亚胺培南的结合模式差异。关键对接结果,WT 和 S90A 突变体:亚胺培南能够以有利的构象结合到活性位点,Lys-91 的侧链取向正确,能够:作为广义碱辅助 Ser-88 去质子化。与亚胺培南的 O-7 羰基氧形成氢键。使 Ser-88 的羟基能够攻击亚胺培南的 β- 内酰胺环碳原子。pSer-90 和 S90D 突变体:Ser-90 的磷酸化或天冬氨酸取代引入了大量负电荷导致 Lys-91 的侧链发生旋转,转向带负电的磷酸基团或天冬氨酸侧链。Lys-91 失去了作为广义碱的功能,也无法与亚胺培南形成氢键。活性位点口袋的形状发生改变,阻碍了亚胺培南的正确结合。
Discovery Studio 中精确测量了关键原子间的距离:WT 中 Lys-91 的 N 原子与 Ser-88 的 Oγ 原子距离为 3.4 Å。S90A 突变体中该距离缩短为 2.7 Å,表明 Lys-91 更有利于辅助 Ser-88 去质子化。pSer-90 和 S90D 突变体中该距离显著增大,且 Lys-91 与磷酸基团或天冬氨酸侧链形成了新的盐桥。分析了四个体系活性位点口袋的体积、形状和静电势分布:S90D 突变体的活性位点入口处出现了明显的空间位阻σ 环(位于结构域 1 的 β8 和 β9 链之间)的构象发生了改变。这些结构变化进一步阻碍了亚胺培南进入活性位点。以上内容揭示的 AmpC 活性位点调控机制,为后续设计靶向 AmpC Ser-90 磷酸化通路的新型抗菌药物提供了结构基础。
参考文献:Comparative Phosphoproteomics Reveals the Role of AmpC β-lactamase Phosphorylation in the Clinical Imipenem-resistant Strain Acinetobacter baumannii SK17