本文聚焦大肠杆菌中全局转录因子 Cra(分解代谢阻遏物 / 激活物)与效应物 FBP(1,6 – 二磷酸果糖)的亲和力对琥珀酸生产的影响,通过半理性设计、分子生物学与发酵工程结合的方法,首次证实两者的正相关性并阐明其分子机制。琥珀酸是重要的平台化合物,大肠杆菌因代谢网络清晰被广泛用于琥珀酸高产菌株构建,但单纯的基因敲除 / 过表达常受限于代谢网络复杂性,全局转录调控成为更有效的策略。Cra 是 GalR-LacI 家族全局转录因子,含 N 端 DNA 结合域和 C 端调控域,通过结合 F1P(1 – 磷酸果糖)、FBP 等效应物,调控糖异生、三羧酸循环(TCA)、乙醛酸分流等多条代谢途径的基因表达。随机突变筛选获得的 Cra 突变体,对 FBP 的亲和力(Kd=130±37 nM)显著高于野生型(Kd=1400±150 nM),且琥珀酸产量提高 22.8%,暗示 Cra-FBP 亲和力可能与琥珀酸合成相关,但机制未明确。本文假设,Cra 与 FBP 的亲和力提升可正向促进琥珀酸生产;亲和力提升通过改变 Cra 对靶基因的转录调控(如激活琥珀酸合成相关途径基因)实现;半理性设计可定向改造 Cra 的 FBP 结合位点,获得高亲和力突变体。本文研究全局转录因子和果糖-1,6-二磷酸盐FEP结合可以提高丁二酸盐的合成。并且为了验证这个假说,单点突变和三点突变用于Cra的半理性设计,提高FEP结合的亲和性。
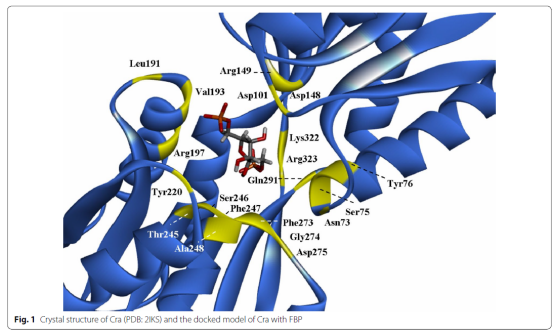
采用Discovery Studio 4.0中的prepare protein对Cra(pdb:2iks)进行预处理,采用define and edit binding site进行活性位点的定义。将Cra和FBP进行分子对接,采用CDOCKER程序,确定了活性位点周围10A的17个关键氨基酸残基。之后采用单点和三点虚拟氨基酸饱和突变的方式,Calculate mutation energy(binding)进行突变模拟。根据突变前后结合自由能的变化,结合实验对虚拟氨基酸突变进行验证,发现三点突变(Tang1683)可以最大限度的提高结合亲和性。具体操作细节如下。
结构的下载与预处理,从RSCB PDB 数据库获取效应物结合缺失型 Cra 的晶体结构(PDB ID: 2IKS),通过 DS 的结构比对功能,将 Cra 的各个链与 2IKS 的 A 链比对,确保结构一致性。
能量最小化:采用DS 的 “Minimization” 协议对 Cra 蛋白结构进行能量最小化处理,消除晶体结构中的空间位阻、不合理键角等问题,使蛋白结构更接近生理状态下的稳定构象,为后续结合模拟提供准确模型。
结合口袋定义:通过DS 的 “define and edit binding site” 协议,结合分子对接结果,精准定位 Cra 与 FBP 的结合口袋区域。
对接程序选择:采用DS 的 CDOCKER 协议进行分子对接,该协议适用于蛋白 – 小分子结合模式预测,且整合了 CHARMm 力场,能精准计算结合过程中的能量变化。
CDOCKER对接参数设置:设定 10Å 的位点球半径来限定结合口袋范围,确保对接仅在预测的活性位点区域进行,提高模拟准确性。
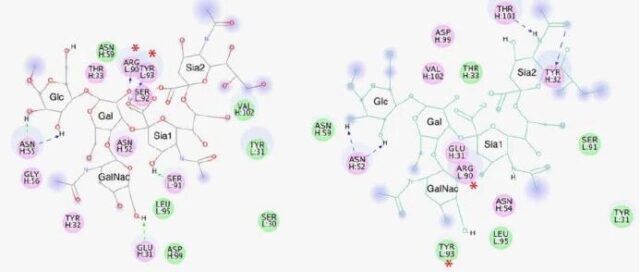
CDOCKER结果分析:通过对接模型分析,明确野生型 Cra 与 FBP 之间存在 3 个氢键和 5 个静电相互作用,为后续突变后 “新增相互作用、提升亲和力” 的假设提供了结构参考。
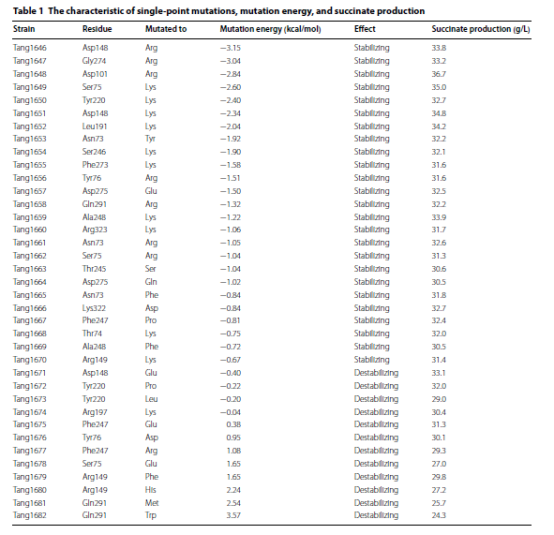
虚拟氨基酸突变设计:利用DS 的 “calculate mutation energy/stability” 模块,对上述 20 个活性位点的氨基酸进行虚拟突变,将每个位点替换为 17 种常见氨基酸,构建大量虚拟突变体。以 “突变能量” 作为核心筛选标准,突变能量越低,代表突变后 Cra 蛋白结构越稳定、与 FBP 的结合亲和力越高。突变能量的计算涵盖范德华力、静电力、非极性作用和熵变等多个维度,确保评估的全面性。
突变结果分析:从300 余个虚拟突变体中筛选出 37 个单点突变体(含 29 个低能量稳定突变体和 8 个高能量突变体,用于拟合亲和力与琥珀酸产量的关系);基于单点突变结果,进一步设计 17 个三点突变体,要求其突变能量低于单点突变的最低能量,最终筛选出 Tang1683(-4.78 kcal/mol)等最优突变体。
参考文献:Succinate production positively correlates with the affinity of the global transcription factor Cra for its effector FBP in Escherichia coli。Biotechnol Biofuels. 2016 Dec 8;9:264.